

Biotechnológikaland
Növényi génszerkesztés – Laborcsoda-váró II.
(Géntechnológikaland No81) A kilencvenes évek gyakorlati szempontból a magyar növényi géntechnológia legerősebb évei voltak {címábra: Hazai gyakorlati eredmények [©(db) →...
(Géntechnológikaland No82)
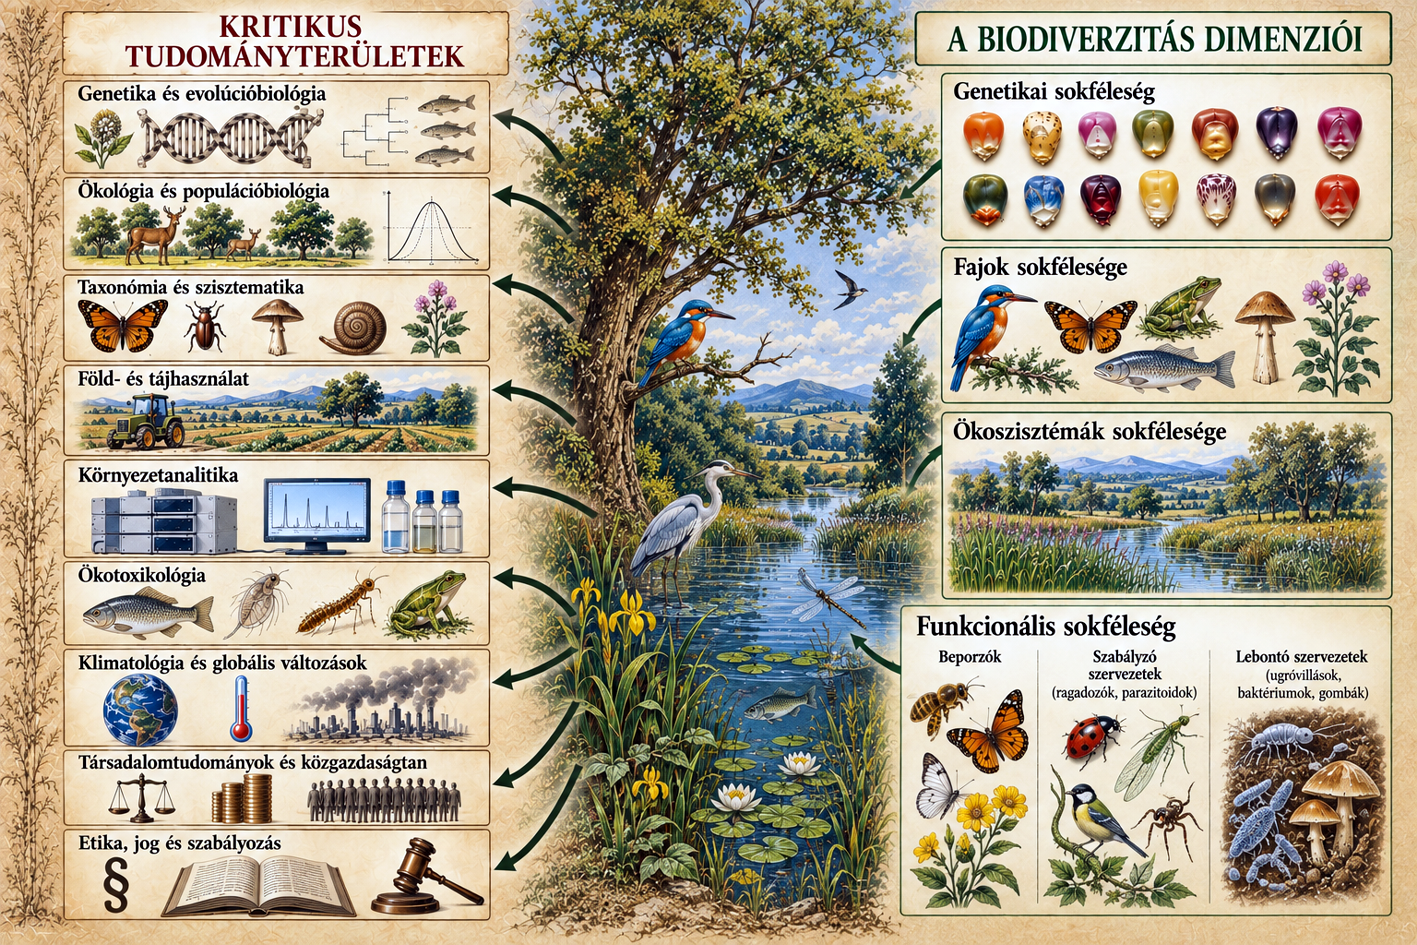
Az NGT ügyében mostanában mozgolódik a Szegedi Biológiai Kutatóközpont és a köré szerveződő géntechnológiai nagyot-mondók köre. Az MTA Biológiai Osztálya, a folyosói híradás szerint állásfoglalásra is készül. Az ökológiában megérintett (ún. zöld) akadémikusok – ahogy hallom – az átlagosnál szkeptikusabbak, bár tanácstalanok is. Nem véletlenül, hiszen a kezdetektől vetési moratórium volt, így a biodiverzitásról {címábra: Géntechnológia és a biodiverzitás [©(db) → AI]} tapasztalatot az egyetlen vethető molyölő kukoricával (MON810) – ők is kis parcellákról – csak nagyon kevesen gyűjthettek hazánkban. A jövendő, saját tapasztalat nélküli MTA állásfoglalóinak ajánlom ezt az írásom. Sok kutató győzött meg arról, hogy idős korban a korszerű gondolkodás látszata miatt a divatos tudományterületek pártolása kritika nélküli. Így válhattak a hazai növényi géntechnológia területén vezető megmondókká olyan személyiségek, akik a géntechnológiával módosított növényekkel semmilyen saját érdemi vizsgálatot nem végeztek. Az ő tudásuk szerintem interpretációkra és hitre támaszkodó, ami egyéni és nem közérdeket szolgál.
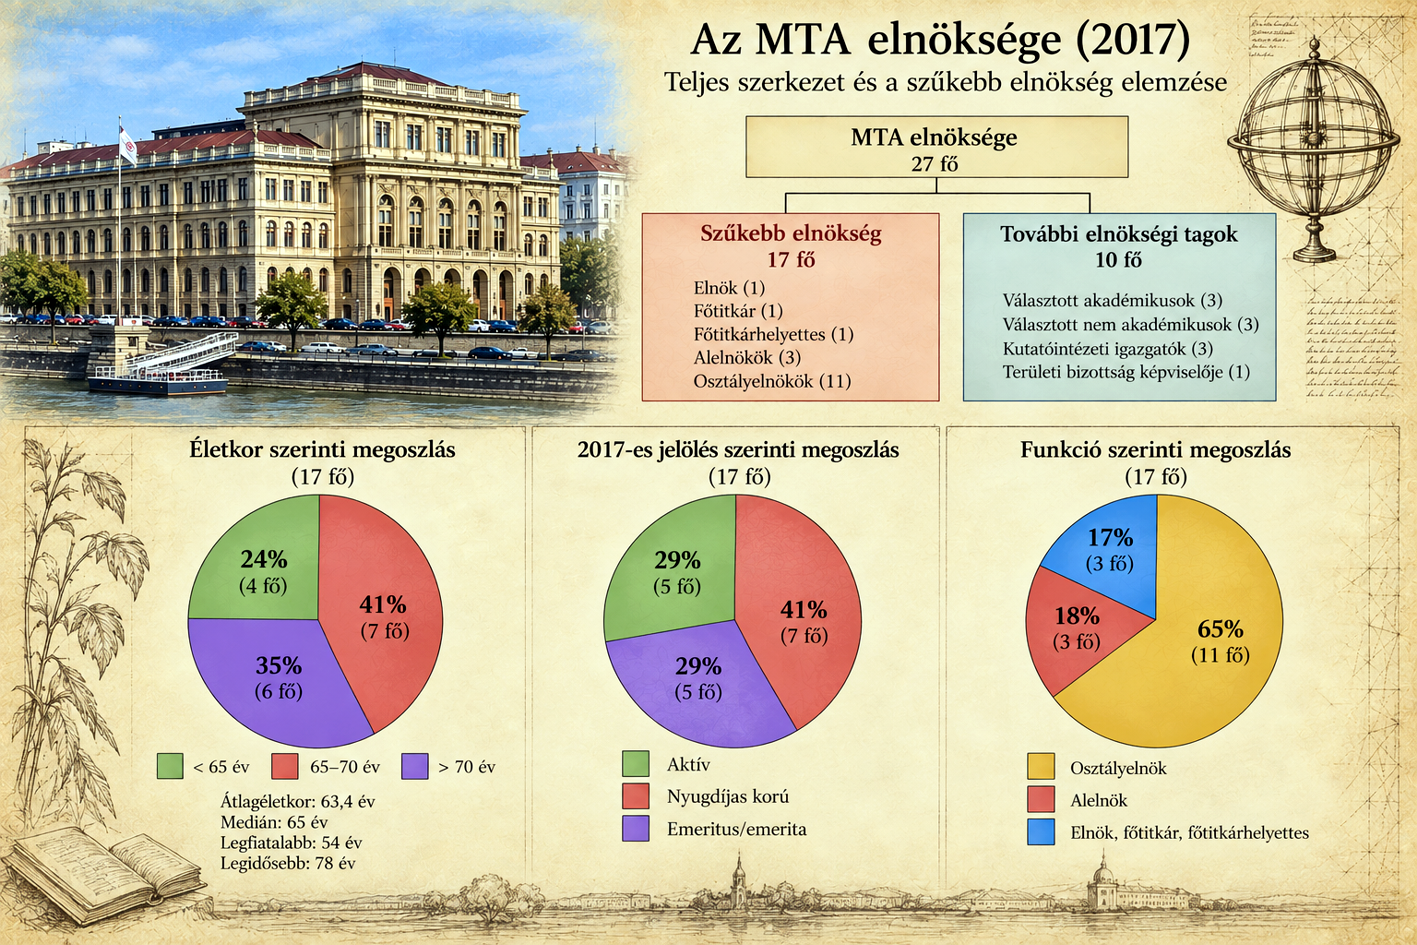
2.ábra: A 2017-es MTA elnökség [©(db) → AI]
Az MTA 2017-es állásfoglalása a genomszerkesztésről. A Magyar Tudományos Akadémia 2017 decemberében adta ki a „Precíziós gén- és genomszerkesztés az élhetőbb világért” című állásfoglalását. Az állásfoglalás alapjául szolgáló, szerintem jelentősen túlzó tartalom Dudits Dénes (agrármérnök), Kosztolányi György (orvos) és Venetianer Pál (biokémikus) munkája. Az előterjesztést a Lovász László (matematikus) által vezetett, átlagéletkorát tekintve nyugdíj-közeli korú MTA Elnöksége 2017. november 28-án ellenszavazat nélkül (ez nagyon különös egy ilyen Európa-szerte vitatott ügyben) támogatta és fogadta el (a teljes akkori elnökség tagjait ma már nem lehet rekapitulálni a szűkebben vett elnökségen kívül; 2. ábra). A döntésben résztvevő aktív korú dolgozók aránya a kétharmad alatt maradt. Egészen hihetetlen nekem, hogy a magyar vezető értelmiségi (akadémikusok, vezető politikusok stb.) között a visszavonulásnak nincs kialakult kultúrája. Nincs a környezetükben olyan fiatal (kinevelt utód), aki udvariasan figyelmeztetné őket, hogy már nem nekik kell a tudománypolitika élvonalában a molinót cipelni. Dudits Dénes szinte a kezdetektől szeretett volna MTA állásfoglalást kiharcolni a növényi géntechnológia kérdésében, de Vizi E. Szilveszter (orvos) és Pálinkás József (fizikus) MTA elnöksége (Dudits akkor alelnök volt) alatt erre nem került sor. Az elnökökben az óvatosság erősebb volt, mint Lovász Lászlóban. Onnan tudom, hogy Vizi és Pálinkás is behívatott és ebben a kérdésben beszélt velem, mint a GMO-Kerekasztal, vagy a GEVB (Géntechnológiai Eljárásokat Véleményező Bizottság) elnökével. A 2017-es MTA dokumentum intézményi kiindulópontja az Agrártudományok Osztályának állásfoglalása volt. Ezt bizonyítja az Orvosi Tudományok Osztályának nyilvántartása is: az osztály a 132/2017. (VI. 21.) számú határozatával támogatta az Agrártudományok Osztályának „Precíziós gén és genomszerkesztés az élhetőbb világért” című állásfoglalását. A Biológiai Tudományok Osztályának későbbi beszámolója már az élettudományi osztályok közös nyilatkozataként hivatkozik rá. Az állásfoglalás egyik központi tétele szerint a genomszerkesztés mint precíziós nemesítés alapvetően különbözhet [!] a hagyományos transzgenikus GMO-k létrehozásától. Ennek egyik indoka, hogy genomszerkesztéssel más fajból származó idegen gén beépítése nélkül is megváltoztathatók az élőlények tulajdonságai. A dokumentum nem a mai NGT1–NGT2 szabályozásról szóló állásfoglalás. Az Európai Bizottság erre vonatkozó rendeletjavaslata csak 2023-ban [!] született meg. A 2017-es MTA-állásfoglalás ezért a mai NGT-szabályozási vita fontos magyar akadémiai előzményének tekinthető, de nem lehet azonos a jelenlegi uniós NGT-kategóriák támogatásával. A mostani cél egy megváltozott elnökséggel ennek meghaladása lehet.
Egy másik, a területen megmondónak számító magyar akadémikus mondta az ezredforduló táján azt a blődlit, hogy a géntechnológia még növeli [!] is a biodiverzitást, hiszen új genetikai kombinációkat hoz létre. Nyilván nem ismerte az ökológia kötött terminusait (nem állítom, hogy könnyedén elsajátítható) és csak a vakvilágba beszélt. Szögezzük le most a biodiverzitás nem egyszerűen a fajok számát jelenti. Nem is egyszerűen az allélgazdaságot. A Biológiai Sokféleség Egyezmény értelmezésében három egymással összefüggő szinten kell gondolkodnunk: a fajon belüli genetikai változatosság (intraspecifikus – allélgazdagság), a fajok közötti változatosság (interspecifikus – fajok sokfélesége egy konkrét élőhelyen), valamint az ökoszisztémák sokfélesége (élőhelyek sokfélesége egy önálló/önszerveződést kínáló területen). A mezőgazdaságban a fajtakérdés az első szinthez tartozik a termesztett fajták, tájfajták és vad rokonok genetikai sokféleségét, a másodikhoz pedig nemcsak a termesztett növényfajok, hanem egyéb felépítők (kultúrterületen gyomnövények), növényevők, beporzók, ragadozók, parazitoidok és lebontó szervezetek együttese is (3. ábra).
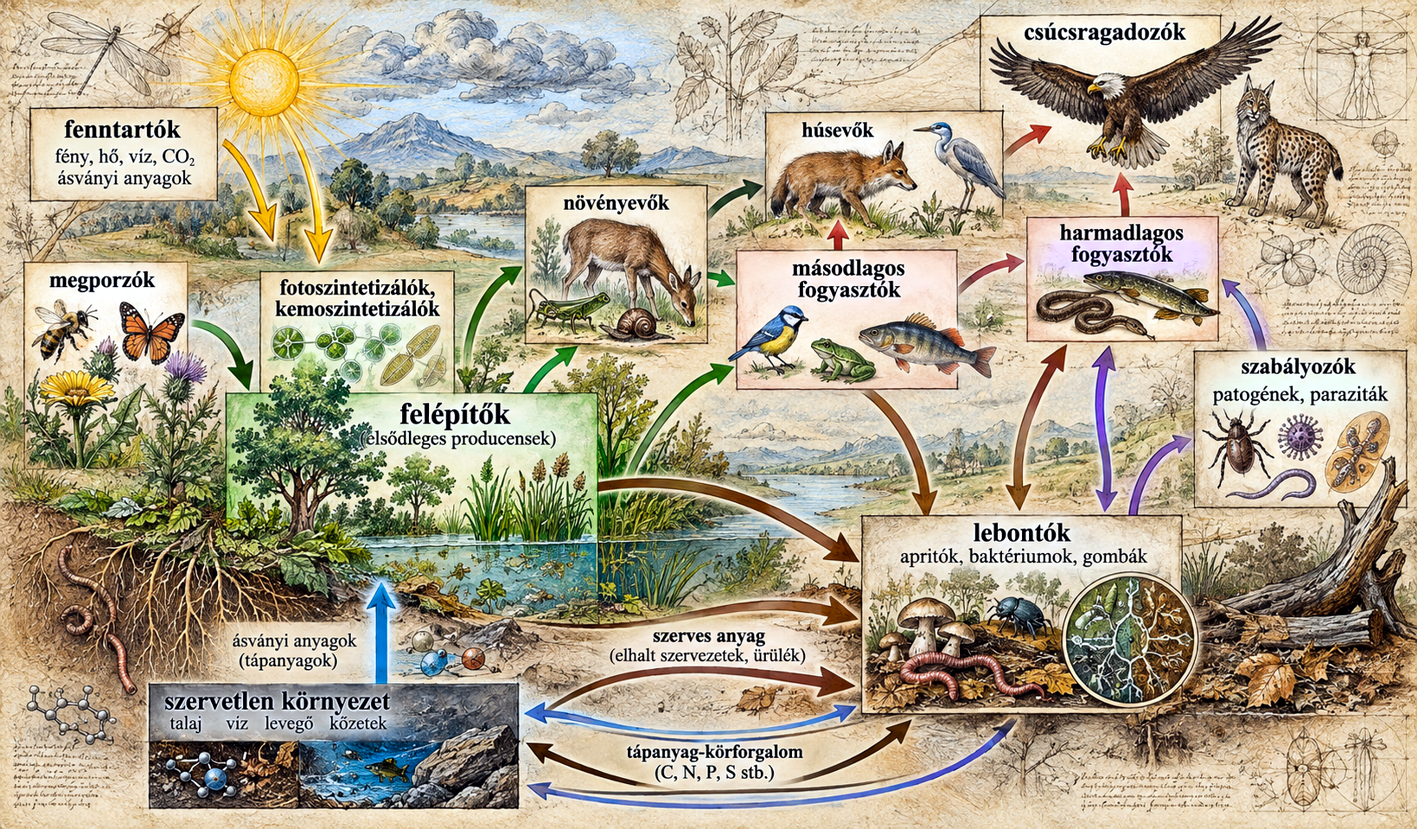
3.ábra: Az ökoszisztéma funkcionális vázlata [©(db) → AI]
A növényi géntechnológia biodiverzitási hatásának megítélésében alapvető módszertani hiba lenne a transzgenikus növény kategóriát önmagában ökológiai hatótényezőként kezelni. A transzgenezissel az evolúció számára idegen (ember által megbütykölt) genom jön létre. A music – muzak mintájára egy jókedvű ökológiában: genom – gebasz az alkotás műfaja. A lényegi oksági sor nagyjából így írható le: genetikai módosítás → megváltozott tulajdonság → szelekciós/fitneszhatás és termesztéstechnológia → génáramlás és fajok közötti interakciók → populáció- és közösségszintű változás. Ez magyarázza, hogy ugyanazon technológiai csoportba tartozó növények biodiverzitási hatása akár ellentétes irányú is lehet. Más a helyzet, ha egy faj saját génjeit hallgattatjuk el. Ekkor valóban szűkíthetjük egy konkrét népességen (fajtán) belüli változatosságot. Ennek is lehetnek következményei, ha az valamilyen enzimet érint, mint a polifenol-oxidázok (PPO) esetében és ilyen módon a növény beltartalmának szokványos lebomlását alternatív biokémiai utak veszik át.
A növényfajta előállítása hosszú folyamat, függetlenül attól, hogy klasszikus nemesítéssel, géntechnológiával vagy génszerkesztéssel hozzák létre. A hagyományos nemesítésben a keresztezéseket több generáción át tartó szelekció, majd többéves szabadföldi és fajtakísérletek követik; a teljes folyamat rendszerint 8-15 évig, esetenként tovább is tarthat. A GM-fajták esetében ehhez hozzáadódik a transzformáció, a létrejött event-ek közötti szelekció és a kiválasztott event részletes molekuláris jellemzése. A megfelelő event-et ezután rendszerint elit nemesítési vonalakba keresztezik, majd üvegházi és több termőhelyes szabadföldi vizsgálatok következnek. A fajtafejlesztéssel részben párhuzamosan folyik a környezeti, élelmiszer- és takarmánybiztonsági vizsgálatok dokumentálása és a hatósági engedélyezés. Emiatt egy GM-termék laboratóriumtól a kereskedelmi termesztésig vezető útja jellemzően mintegy 11-15 év lehet (4. ábra), bár az egyes fejlesztési szakaszok jelentősen átfedik egymást. Az egész folyamat sem gyorsabbnak, sem olcsóbbnak nem mondható, a fajta-előállításnak csak negyede a kutatási munka, míg a többi az F+I területére esik és egészen más szakértelmet igényel. A GM-fajtaelőállítás főként a környezet-egészségügyi vizsgálatokat hanyagolta el eddig, ami véleményem szerint az európai társadalmi és politikai elfogadottság kudarcához is hozzájárult. Ezen túlmenően olyan növényi géntechnológiai felületeket sem sikerült találni, ami az EU-tagországok vezetőit (haszon elvezetése technológiadíj formájában), termelőit és fogyasztóit (számukra megoldásokat jobbára egyik fejlesztés sem kínált) is érdekeltté tette volna.
Az NGT-koncepció, a célzott génszerkesztés, elsősorban a kívánt genetikai változat létrehozását gyorsíthatja fel. Ha a módosítás közvetlenül egy jó agronómiai tulajdonságú elit genotípusban hozható létre, a hosszadalmas visszakeresztezés egy része is elmaradhat. A gyorsított generációváltással kombinálva a nemesítési szakasz tovább rövidíthető. Ez azonban nem jelenti azt, hogy egy génszerkesztett növény a laboratóriumból közvetlenül a termesztésbe kerülhet. A kívánt tulajdonság stabilitását, agronómiai értékét és környezeti alkalmazkodását továbbra is több generációban, termőhelyen és évjáratban kell ellenőrizni. Az EU új szabályozása szerint 2028-tól az NGT1 kategóriába kerülő növények hatósági útja is lényegesen egyszerűbb lehet a GMO-kénál, míg az NGT2 növényekre szigorúbb követelmények maradnak. Ezért az NGT a fejlesztési időt valóban rövidítheti, de a többéves szabadföldi fajtakísérleteket és a vetőmag-felszaporítást nem teszi feleslegessé.
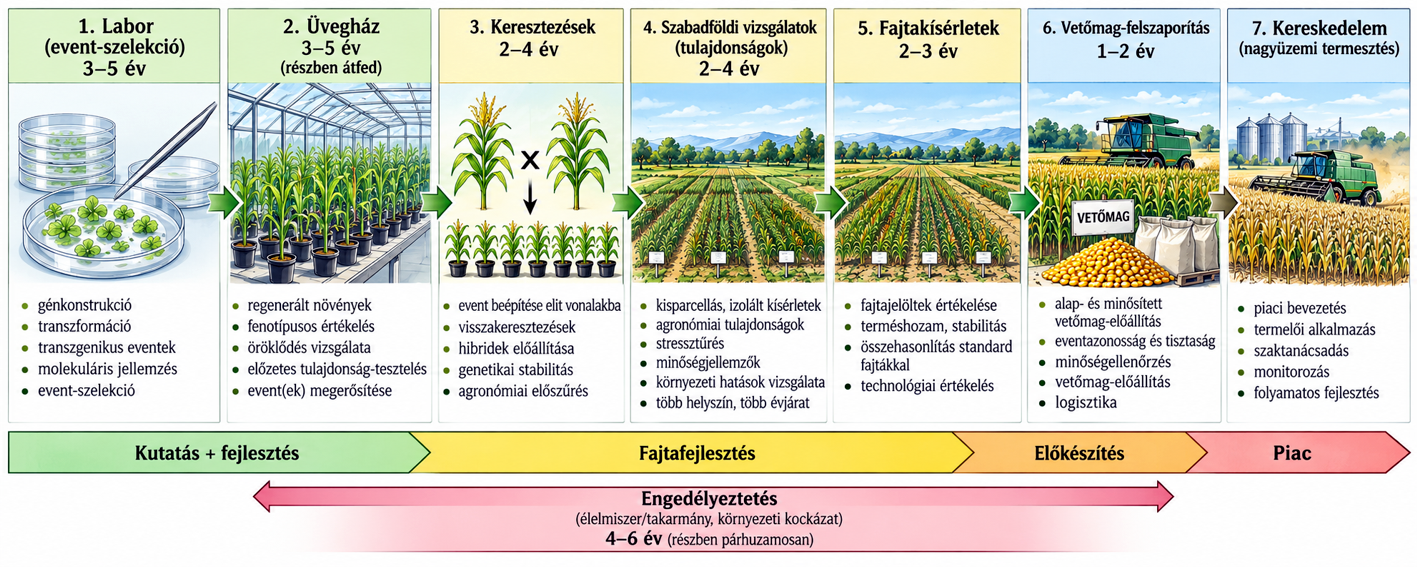
4.ábra: A GM-fajtaelőállítás lépcsőfokai [©(db) → AI]
Uniformizál-e a géntechnológia? A legfontosabb különbséget a géntechnológiai művelet és a növényfajta előállítása, majd termesztési elterjedése között kell megtenni. A génszerkesztés – például Crispr/Cas alkalmazásakor – rendszerint egy konkrét genomban (a módosított genom uniformitását a kiindulási szövet genetikai tartalma határozza meg) funkcionális genomi helyet változtat meg. Ettől a faj genom-készlete nem válik uniformmá, csak a fajta indul el a nagyon erős szelekció miatt ebben az irányba és allélszegénnyé válik. A GM-fajta genetikai uniformitását az határozza meg, milyen genetikai háttérből indult a nemesítés, öntermékenyülő vagy idegentermékenyülő fajról van-e szó, történt-e beltenyésztés vagy hibridizáció, hány alapító genotípust használtak, és végül hány eltérő genetikai hátterű fajta kerül a termesztésbe. A termesztett GM-fajta általában a módosított apavonal (labor) és a nagy teljesítményű, a termőhelyen bevált anyavonal (csúcsfajták), amivel a fajta allélgazdagsága is helyre billenhet.
Ez különösen fontos a génszerkesztett növény és vadformájának összehasonlításakor. Egy homozigóta kereskedelmi vonal természetesen lényegesen uniformabb lehet egy vad populációnál. Csakhogy egy vonalat hasonlítunk egy populációhoz. Hasonló különbséget találnánk egy hagyományos nemesítéssel előállított tiszta vonal és a vad populáció között is. Abból tehát, hogy egy Crispr-vonal kevésbé változatos, mint vad rokona, nem következik, hogy a fajon belüli diverzitásvesztést (allélszegénységet) a Crispr okozta.
A kultúrnövények genetikai beszűkítése ráadásul jóval régebbi a géntechnológiánál. A domesztikáció, az alapítóhatás, a szelekció és a modern fajtanemesítés egymást követő szűrők. Szójában Hyten és munkatársainak klasszikus populációgenetikai vizsgálata azt mutatta, hogy a vad Glycine soja nukleotiddiverzitása nagyobb volt, mint az észak-amerikai elit szójaanyagé; a diverzitásvesztés jelentős része már a domesztikáció és az alapítóhatások során bekövetkezett. A biodiverzitás szempontjából ezért nem az az igazán fontos kérdés, hogy egy génszerkesztett növény genetikailag uniform-e, hanem az, hogy mekkora genetikai választékot képvisel a termesztésbe kerülő génszerkesztett fajtaportfólió. Ha egyetlen sikeres szerkesztett genotípus nagy területen sok helyi fajtát vagy tájfajtát vált fel, a termesztett génkészlet homogenizálódik. Ha viszont ugyanazt a kedvező allélt számos eltérő helyi vagy regionális genetikai háttérbe szerkesztik be, a génszerkesztés önmagában nem szükségképpen jár genetikai homogenizációval. A kutatási összefoglaló fontos megszorítása, hogy az utóbbi lehetőség jelenleg inkább technológiai lehetőség, mint nagy területen empirikusan igazolt jelenség.
A kukorica genetikai változatossága már a domesztikáció során szűkült: a tájfajták azonban a vad Zea mays ssp. parviglumis nukleotid-diverzitásának mintegy 83%-át megőrizték, vagyis továbbra is rendkívül gazdag genetikai forrást képviselnek. A modern nemesítés újabb szűkületet okozott; a vizsgált beltenyésztett vonalak a tájfajtákban kimutatott allélek kevesebb mint 80%-át reprezentálták, bár ez a két százalék eltérő vizsgálatokból és különböző diverzitásmutatókból származik, ezért közvetlenül nem vethető össze. A GM-kukoricák esetében nincs bizonyíték arra, hogy önmagában a transzgén beépítése általános, további allélgazdagság-csökkenést okozna: genetikai változatosságukat elsősorban az a nemesítési háttér és az alkalmazott vonalak határozzák meg, amelyekbe az event-et beépítik. Ugyanezért az NGT/génszerkesztés sem tekinthető önmagában újabb genetikai szűkületnek: néhány célzott nukleotid- vagy génváltoztatás nem azonos a teljes genom diverzitásának csökkenésével. Az 5. ábra legfontosabb tanulsága tehát, hogy a kukorica genetikai sokféleségének nagy léptékű beszűkülése elsősorban a domesztikációhoz és a nemesítési szelekcióhoz, nem pedig önmagában a GM- vagy NGT-technológiához kapcsolható.
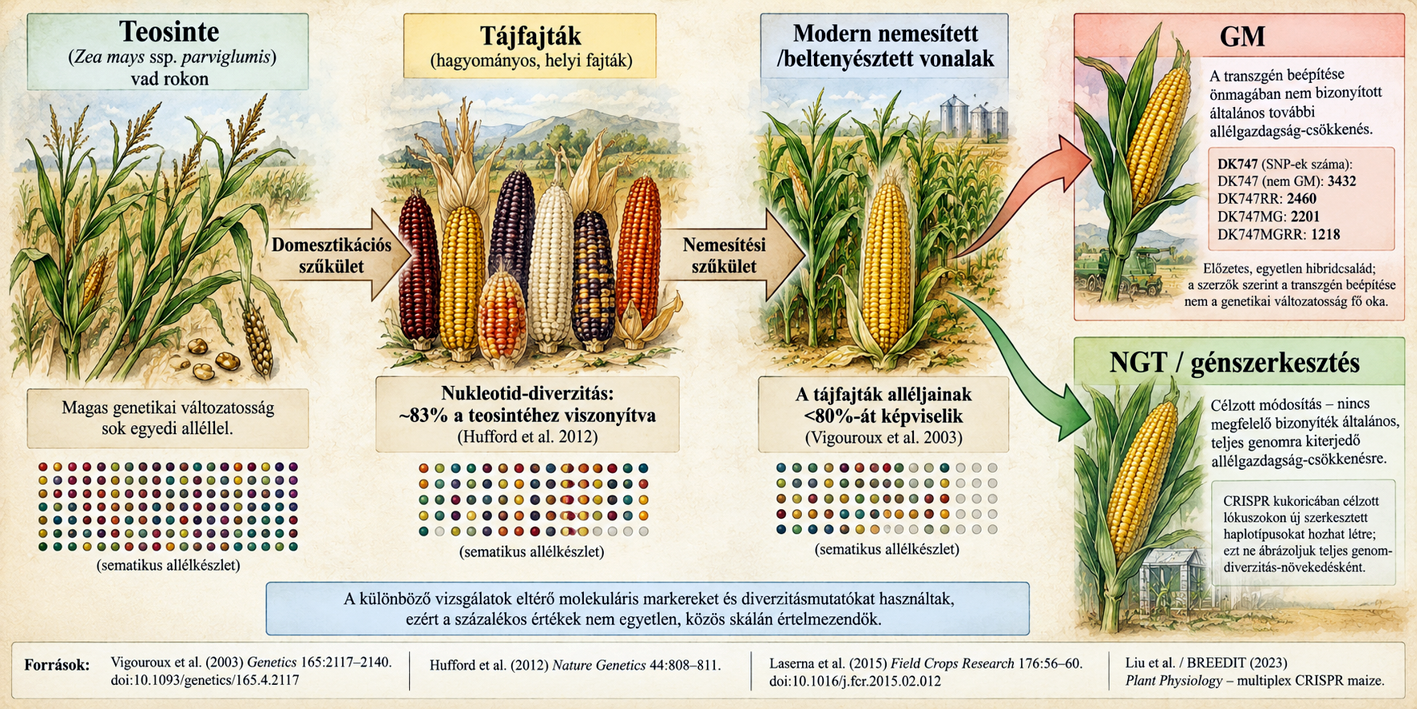
5.ábra: A domesztikáció és a nemesítés hatás a teosinte allélkészletére [©(db) → AI]
A fajok közötti biodiverzitásnál még kevésbé beszélhetünk általános GMO-hatásról. Különösen jól mutatják ezt a Bt-növények. A Bt-kukorica és Bt-gyapot csökkenti bizonyos célzott növényevő rovarok (plusz a rájuk épülő ragadozók és parazitoidok) abundanciáját, ugyanakkor a termesztésük miatt elhagyott vagy csökkentett inszekticid-kezelések más ízeltlábúak számára kedvezőek lehetnek. Marvier és munkatársainak Bt-kukoricára és Bt-gyapotra kiterjedő metaanalízise szerint a nem célszervezet gerinctelenek abundanciája általában magasabb volt a Bt-táblákon, mint a hagyományos inszekticiddel kezelt táblákon, ugyanakkor egyes csoportok abundanciája alacsonyabb lehetett a Bt-t nem tartalmazó és inszekticiddel sem kezelt kontrollhoz képest. Vagyis még az eredmény előjele is attól függ, mi a megfelelő összehasonlítási alap.
A fajok közötti diverzitás esetében ezzel szemben elsősorban a beépített tulajdonság, az általa kiváltott termesztéstechnológiai változás, valamint a módosított növény és más szervezetek közötti ökológiai kapcsolatok számítanak. Bt-növényeknél az inszekticid-használat csökkenése bizonyos nem célszervezeteknek kedvezhet, míg herbicid-toleráns rendszerekben az intenzívebb vagy hatékonyabb gyomszabályozás csökkentheti a gyomnövényzetet és értelemszerűen az arra épülő táplálékhálózat elemeit.
Más kép rajzolódhat ki a glyphosate-tűrő növényeknél. Itt a genetikai módosítás közvetett hatása válhat meghatározóvá: megváltozik a gyomirtás módja, időpontja és hatékonysága, ez pedig módosítja a gyomnövényzet fajösszetételét és abundanciáját. A gyommagvak és a gyomnövények eltűnése tovább gyűrűzhet az ezeket fogyasztó gerinctelenekre és gerincesekre. A brit Farm Scale Evaluations ezért különösen fontos: megmutatta, hogy a géntechnológiai glyphosate-tűrés ökológiai következményei jelentős részben nem magából a genetikai módosításból, hanem a hozzá kapcsolódó megváltozott herbicidhasználatból eredtek. Egyes rendszerekben: kevesebb gyom, kevesebb virág, kevesebb lepke- és méhféle.
Glyphosate-tűrő repce elvadult populációinak hosszabb fennmaradását ugyancsak dokumentálták. A génáramlás azonban nem azonos a biodiverzitási kárral. Az ökológiai következmény attól függ, mit csinál az átkerült allél a vad populációban. Ha növeli a fitneszt, terjedhet; ha közel semleges, genetikai sodródásnak lehet kitéve; ha hátrányos, a természetes szelekció eltávolíthatja.
Itt el is érkeztünk az ökológiát illető legjelentősebb problémához: az idegenbeporzó (allogám) kultúrnövényekhez. A kukoricában, olajrepcében, napraforgóban, rozsban, számos here- és fűfajban – a pollen jelentős része más egyedről érkezik, ezért két egyidejűleg virágzó fajta között természetes génáramlás következhet be. Az idegen pollen által megtermékenyített növény magjában létrejövő embrió F₁ fajtahibrid: genetikai állománya részben az anyanövénytől, részben az idegen fajta pollenadó növényétől származik. Ezért fontos különbség, hogy a pollenáramlás nem feltétlenül változtatja meg az adott évben betakarított vegetatív terméket, viszont a megtermékenyítésből származó mag genetikai és kémiai összetételét már igen. Kukoricánál ez különösen közvetlen, mert maga a betakarított szem a megtermékenyítés terméke; cukorrépánál viszont az árutermelésben betakarított gyökérre az adott évi idegen beporzásnak nincs ilyen genetikai hatása.
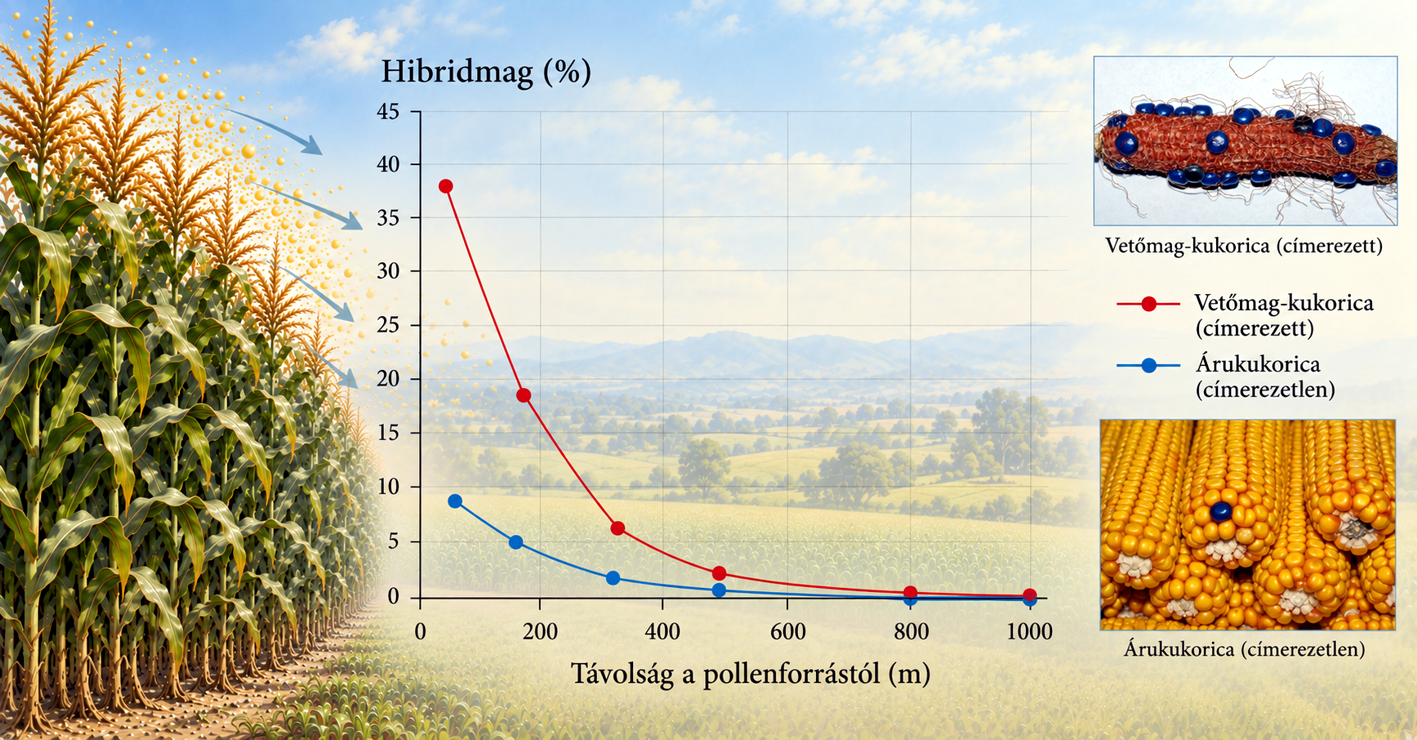
6.ábra: Hibridmag-képződés aránya a pollenforrás távolságától függően, domináns kék-szemű kukoricánál [©(db) → AI]
A vetőmagtermesztésben ezért az idegen beporzás alapvető fajtafenntartási probléma. Ha egy vetőmag-előállító tábla közelében ugyanazon faj másik, egyidejűleg virágzó fajtája található, annak pollenje csökkentheti a vetőmagtétel genetikai fajtaazonosságát és fajtatisztaságát (6. ábra). Az OECD előírásai ezért az idegentermékenyülő fajok vetőmagtermesztésénél a környező pollenforrások ellenőrzését és fajspecifikus izolációt írnak elő; elégtelen izolációnál akár a zavaró pollenforrás részleges vagy teljes eltávolítása is szükséges lehet. Az EU vetőmag-szabályozásában például kukoricánál 200 m szerepel (ez a mi vizsgálatainkban kevésnek mutatkozott) a nem kívánt idegen pollenforrástól való minimális távolságként, ha nincs más megfelelő védelem. Az olajrepcénél az OECD alapvető és minősített vetőmagjára 200, illetve 100 m-es minimum szerepel; hibridvetőmag-előállításnál ennél lényegesen szigorúbb izolációt is alkalmaznak.
A probléma biotermesztésben két külön szinten jelentkezik. Az egyik a hagyományos fajtatisztaság: egy biovetőmag-termesztő állomány ugyanúgy kereszteződhet egy másik bio vagy konvencionális fajtával. A másik a GM-növényből érkező pollen. Az EU ökológiai szabályozása kizárja a GMO-k használatát az ökológiai termelésből, és az ökológiai növényi szaporítóanyagra külön követelményeket állapít meg. Ugyanakkor a szabályozási dokumentumok is elismerik, hogy a GM-anyag alacsony szintű, véletlen jelenléte a nem-GM és ökológiai termelési láncban nem zárható ki teljesen; ennek egyik lehetséges útja éppen a keresztbeporzás, a másik a vetőmag-keveredés, az árva-kelés, illetve a betakarítási, szállítási és tárolási keveredés. Ez különösen fontos különbség: az izolációs távolság nem jelent biológiai falat. A pollen koncentrációja a távolsággal rendszerint gyorsan csökken, de ritka, nagyobb távolságú génáramlás továbbra is lehetséges. Emiatt az izoláció célja a gyakorlatban nem feltétlenül a kereszteződés nullára csökkentése, hanem annak egy meghatározott szint alatt tartása. Az Európai Bizottság együtt-termesztési ajánlása kifejezetten kimondja, hogy a szükséges izoláció függ a növény keresztbeporzási hajlamától, és vetőmagtermesztéshez más – rendszerint szigorúbb – követelmény lehet szükséges, mint árutermesztéshez.
A kukorica erre jó modell. Szélporozta, idegentermékenyülő faj, ezért a szomszédos fajták között könnyen létrejöhet kereszteződés. Ezek nem univerzális izolációs előírások: a táblaméret, szélirány, virágzási szinkron, pollenforrás nagysága és a mintavétel módja erősen befolyásolja az eredményt.
Olajrepcében még összetettebb a helyzet. A pollent rovarok és részben a szél is terjeszti, emellett a kihullott magból több év múlva árva-kelés jelenhet meg, és rokon Brassica taxonokkal történő génáramlás lehetőségét is figyelembe kell venni (7. ábra). Emiatt nem elegendő pusztán a szomszédos tábla távolságát vizsgálni: a vetésforgó, az árva-kelések eltávolítása és a korábbi növényállományok is számítanak.
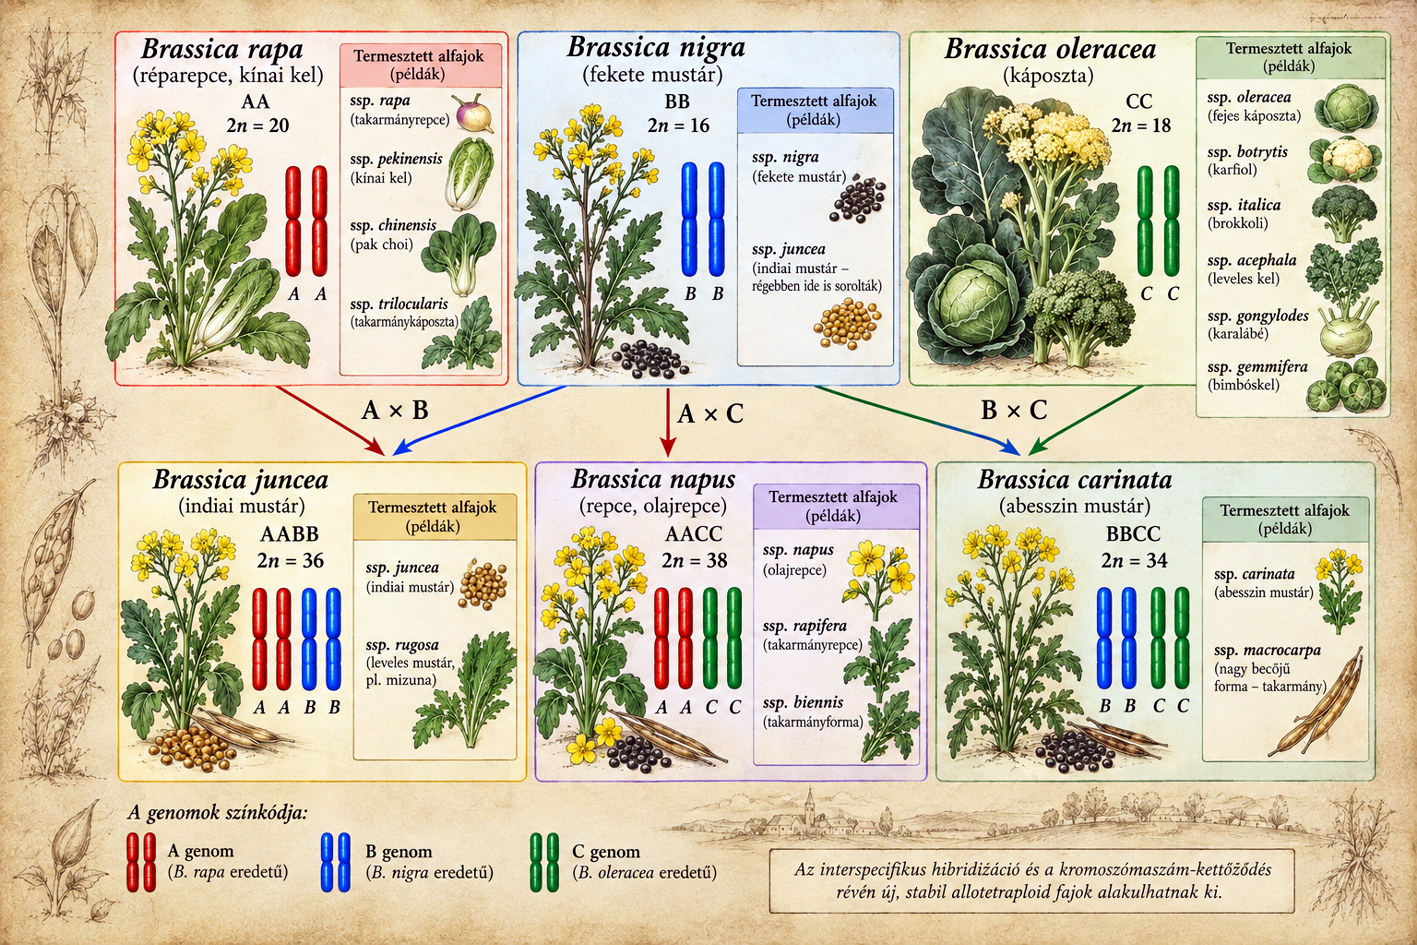
7.ábra: Génkészlet – Interspecifikus hibridizáció a mediterrán géncentrumú, rovarbeporzású Brassica fajoknál [Nagaharu, U. (1935): Jap. J. Bot., 7: 389-452. nyomán → (db) → AI]
A biovetőmag-termesztés szempontjából tehát az idegen beporzás különösen érzékeny kérdés, mert ugyanabban a magban egyszerre jelenik meg a következő generáció és a forgalmazott termék. A genetikai tisztaság megőrzésének eszközei az izolációs távolság, a virágzási idő elkülönítése, a környező pollenforrások felmérése, az árva-kelések és rokon kereszteződő fajok kontrollja, a szántóföldi ellenőrzés, valamint végül a vetőmagtétel fajtaazonossági/fajtatisztasági vizsgálata. Az ISTA (International Seed Testing Association) a fajtaellenőrzést éppen annak meghatározására használja, hogy a vetőmagtétel milyen mértékben felel meg annak a fajnak és fajtának, amelyként forgalmazzák; ehhez ma már molekuláris markereket is alkalmaznak.
A termesztett és vad növények között létrejövő génáramlás különleges helyzetet teremt, mert összeköti a mezőgazdasági genetikai diverzitást a természetes populációk genetikai szerkezetével. Ha a kultúrnövénynek szexuálisan kompatibilis vad rokona él a közelben (kiemelten géncentrumok), a pollen vagy a mag közvetítésével a módosított allél bekerülhet a vad génkészletbe.
Transzgenikus növények esetében ennek valóságára már erős terepi bizonyítékok vannak. A géntechnológiával módosított fehér tippan (Agrostis stolonifera) pollenmediált génáramlását táji léptékben is kimutatták, és termesztésen kívüli transzgenikus populációkat is találtak.
Ugyanez az alapelv vonatkozik a génszerkesztésre. Egy vad populációba bekerülő Crispr-rel létrehozott betegségrezisztencia-, virágzási időt módosító vagy herbicidtolerancia-allél ökológiai következményét nem elsősorban annak eredete, hanem fenotípusos és fitneszhatása határozza meg. Ez egyben azt is jelenti, hogy a fajok közötti biodiverzitás vizsgálatakor nem elegendő a fajgazdagságot mérni. Egy faj jelen lehet a géntechnológiai növényállományban és kontrolljában egyaránt, miközben abundanciája nagyságrendileg eltér. Emiatt a fajszám mellett Shannon-, Simpson- vagy Hill-diverzitás, illetve közösségi összetétel és funkcionális diverzitás vizsgálata is szükséges. A jelenlegi szakirodalomból nem vezethető le általános szabályként, hogy a növényi géntechnológia önmagában növeli vagy csökkenti a biodiverzitást. Nem az a biológiailag legérzékenyebb kérdés, hogy egy növény GMO vagy NGT, hanem az, hogy milyen genetikai változást hordoz, milyen genetikai háttérben és mekkora területen terjed el, milyen szelekciós előnyt jelent, hová áramolhat tovább az új génkészlet, és milyen termesztési gyakorlatot vált ki. Mindez itt jobbára csak a biodiverzitás kapcsán felmerülő kétségek köre, amely elsősorban a hazai ökológusok asztala; ehhez társul a környezetanalitika (szermaradékok, pl. Cry-toxinok, glyphosate), ökotoxikológia (szermaradékok hatásai az ökoszisztémában), környezet-egészségtan (szermaradékok hatásai a gerinceseken), ökológiai termesztés (idegen beporzóknál génáramlás miatti koegisztencia-képtelenség) és közgazdaságtan (szabadalmi és társadalmi hatások) alapvetései. A növényi géntechnológia szerteágazó hatásai miatt nem véletlenül keltett akkora vitát Európában.
Darvas Béla
Bankszámlaszám: 12011265-01425189-00100001
Bank neve: Raiffeisen Bank
Számlatulajdonos: Átlátszónet Alapítvány
1084 Budapest, Déri Miksa utca 10.
IBAN (EUR): HU36120112650142518900400002
IBAN (USD): HU36120112650142518900500009
SWIFT: UBRTHUHB
Számlatulajdonos: Átlátszónet Alapítvány
1084 Budapest, Déri Miksa utca 10.
Bank neve és címe: Raiffeisen Bank
(H-1133 Budapest, Váci út 116-118.)
Támogasd a munkánkat az Átlátszónet Alapítványnak küldött PayPal-adománnyal! Köszönjük.
Támogatom PayPal-adománnyalHa az 1 százalékodat az Átlátszó céljaira, projektjeire kívánod felajánlani, a személyi jövedelemadó bevallásodban az Átlátszónet Alapítvány adószámát tüntesd fel: 18516641-1-42
1% TÁMOGATÁS
Támogasd a munkánkat 10 ezer forint adománnyal, mi pedig megajándékozunk egy pólóval. Katt a részletekért.
Támogasd a munkánkat palackvisszaváltással, kattints az üvegvisszaváltós oldalra, mentsd el a kódunkat, és használd azt a Repontoknál!
Ha van bankkártyád, akkor pár kattintással gyorsan tudsz rendszeres vagy egyszeri támogatást beállítani nekünk az adjukossze.hu oldalán.


Postai befizetéssel is tudsz minket támogatni, amihez „sárga csekket” küldünk. Add meg a postacímedet, és már repül is a csekk.
Néző, Szurkoló, B-közép és VIP-páholy kategóriás Átlátszó-előfizetések között válogathatsz a Patreonon.
Bárhol is dolgozol a világban, ha a munkáltatód lehetőséget ad arra, hogy adott összeget felajánlj egy nonprofit szervezetnek, akkor ne feledd, a Benevity-n keresztül az Átlátszónet Alapítvány is ajánlható.


Ha az 1 százalékodat az Átlátszó céljaira, projektjeire kívánod felajánlani, a személyi jövedelemadó bevallásodban az Átlátszónet Alapítvány adószámát tüntesd fel: 18516641-1-42
(Géntechnológikaland No81) A kilencvenes évek gyakorlati szempontból a magyar növényi géntechnológia legerősebb évei voltak {címábra: Hazai gyakorlati eredmények [©(db) →...
(Géntechnológikaland No80) Öt szegedi kutató a HVG360-ban írt cikkükben határozottan kiállt az új genomikai technikák (NGT) mellett. Írásuk szerint a...
(Géntechnológikaland No79) Az egyik általános tanulság, hogy miközben látszólag mindenki ugyanarról beszél (interpretál), korántsem ugyanazt érti GMO, kockázat, természetesség vagy...
(Géntechnologikaland No78) Ukrajnában a GMO-k társadalmi megítélése összességében óvatos, sokszor elutasító. A közvélemény-kutatások és piaci tapasztalatok szerint a lakosság jelentős...
Támogasd a munkánkat banki átutalással. Az adományokat az Átlátszónet Alapítvány számlájára utalhatod. Az utalás közleményébe írd: „Adomány”, köszönjük!